
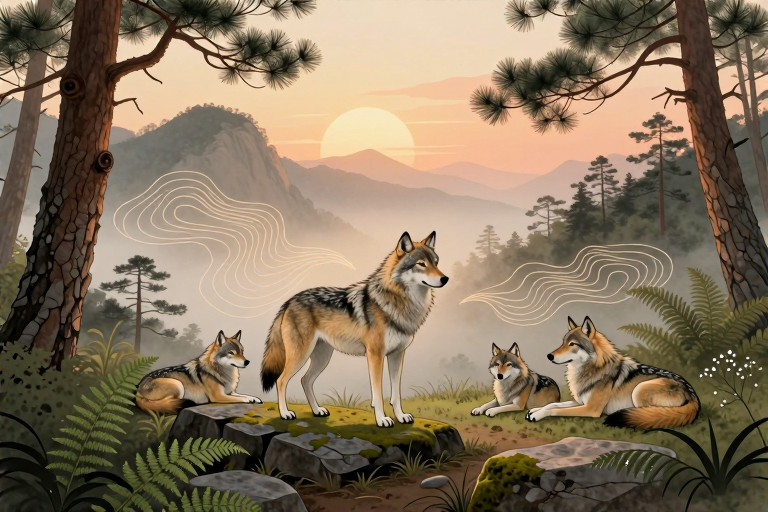
直接回答你的问题:没有固定数字。过去学者凭外观和产地给它们起过四十多个名字,现代科学把它们归为同一种——灰狼。真正值得关注的不是数清分了多少类,而是同一套基因如何在不同土地上长出了不同的生存策略。
分类的旧账新说
十九世纪到二十世纪初的自然博物馆里,塞满了各地运来的毛皮和剥制标本。学者们对着这些静止的躯壳做比对,发现西伯利亚草原上的个体耳朵更尖、体型偏瘦,北美落基山脉那边的骨架粗壮、肩背宽阔,阿尔卑斯山脚下的又披着厚实的冬装。于是拉丁学名像雪花一样往下掉:欧亚狼、阿拉斯加狼、意大利亚平宁狼、墨西哥灰狼……名单越拉越长,分类学家一度把它们拆成四十多个亚种。
这种做法在显微镜和测序仪出现之前很合理。人们靠肉眼量颅骨长度、数牙齿磨损程度、摸皮毛密度来划界。地理隔离确实会留下痕迹,但把每一处微小差异都当成独立类型的终点,反而掩盖了它们之间的流动关系。名字越多,越容易让人误以为自然界被切成了一格格互不相关的盒子。
外形差异的原因
自然选择更像一把缓慢打磨的刻刀,而不是裁剪图纸的剪刀。寒冷地带需要减少热量散失,个体体型会向增大方向演化;四肢和耳廓则会缩短,降低表面积与体积比。这是经典的生态地理规律在皮毛兽身上的直接投影。相反,温带与亚热带边缘的种群面临散热压力,骨架更紧凑,被毛变薄且底色偏浅或带红褐斑纹。
猎物分布同样推着外形走。追逐驯鹿和野牛的狼群需要长距离奔袭,后腿肌肉比例更高;活动于岩石峭壁和林缘地带的个体则发展出更强的抓地力和灵活转向能力。毛色并非随意染色,雪地环境筛选出高反光的白色系,荒漠与灌木丛偏好沙土色调的过渡型。这些差异都是同一套发育程序在不同环境变量下调出的参数组合。
基因后来查明白了
当研究人员把线粒体DNA和全基因组数据铺在屏幕上时,地图上的界线开始模糊。迁徙通道的存在让不同区域的个体持续交换遗传物质,边界不是陡崖而是缓坡。种群之间呈现明显的渐变特征:从东欧到西伯利亚再到阿拉斯加,基因频率像水波一样逐层推移。
岛屿和孤立山脉的情况更直观。温哥华岛上的狼因为海平面上升与陆地隔绝,遗传多样性下降,体型缩小、吻部变短,但基因组并未突破物种形成的门槛。它们只是经历了短暂的瓶颈期,保留了灰狼的完整生殖能力。一旦地理屏障消失或人工干预恢复连通,基因流动就会重新抹平这些局部差异。
测序技术还揭示了历史迁移路线的重叠带。冰期反复进退时,森林与苔原交替扩张,种群随之南退北进、多次相遇又分离。现代分布格局不是长期隔离的结果,而是动态推拉留下的褶皱。把静态标本当成分类终点,自然会得出割裂的结论。
红狼郊狼的真实身份
北美东部的红狼和中西部的杂交群是另一个需要理清的问题。人类扩张切断了传统走廊,原本各自占据不同生态位的犬科动物被迫在碎片化生境里相遇。隔离了上万年的基因库重新接触,繁殖屏障迅速降低。
基因组比对显示,部分被称作红狼的个体携带大量郊狼序列,而某些北美东部的野化群体又夹杂着灰狼片段。这种混合不是分类失败,而是生态位空缺下的快速适应策略。它们在体型、食性和行为上调整自己以填补顶级捕食者的空白,遗传边界在自然选择与人类干扰的共同作用下变得流动。
至于史前著名的洞刃齿虎和恐狼,它们早已随更新世末期的气候剧变退出历史舞台。基因证据确认恐狼属于独立演化支,与现代灰狼没有直接延续关系。把灭绝的旁系亲属拉进今天的计数里,只会模糊现存物种的真实图景。
现在该怎么看它们
当代保护生物学不再执着于数清分了多少类,而是关注功能群与关键种群的存续状态。一片完整栖息地里的狼维持着捕食压力、尸体残骸带来的养分循环以及次级消费者行为改变,这些生态链条比分类标签更直接决定荒野的健康程度。
当你走进林区或草原边缘,不必急于给眼前的个体贴上新旧学名。它们正在用脚步丈量食物网的重力线,用呼吸调整植被的演替节奏。真正的多样性不在目录里,而在每一次追逐、分食与育幼的动态平衡中。
本文地址:https://zlaiw.com/8495.html







暂无评论内容