
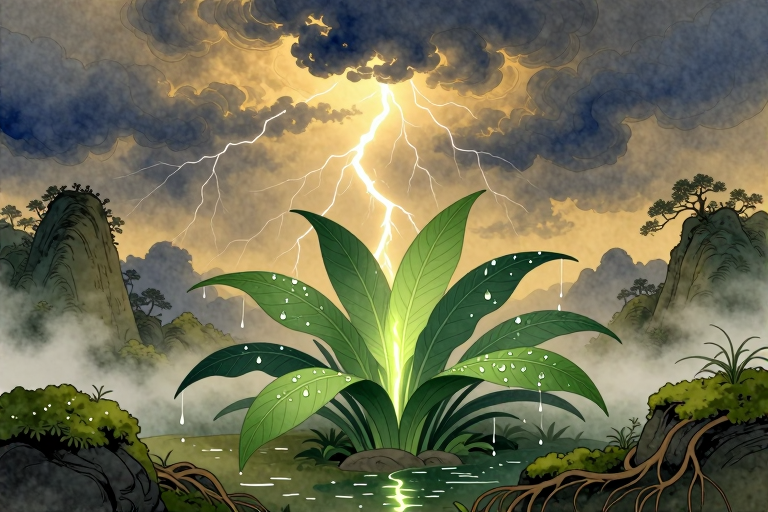
打雷不能光合作用。这个结论很明确,因为闪电和植物的光合作用的工作原理完全不在一个频道上。很多人看到夏天雷雨过后草木突然拔节生长,很容易把这两件事直接挂钩,仿佛天上的电火花是植物吃饭的充电宝。实际上,闪电是一场大气层里的瞬时物理放电,而光合作用是细胞内部精密运转的生物化学流水线。它们之间没有直接的因果链条,但大自然确实藏着一套更巧妙的间接联系。
闪电和阳光的物理区别
先看能量形态的区别。阳光属于电磁波里的可见光波段,光子像细雨一样持续不断地洒下来,强度稳定、频率均匀。植物的叶片早就进化出了接收这种细水长流的接口。闪电则是高压气体击穿空气形成的等离子体通道,电压高达上亿伏特,电流瞬间突破万安培,温度能飙到三万摄氏度以上。它释放的是强烈的电磁脉冲和电离辐射,而不是植物需要的可见光子。
如果把叶片比作能量转换站,阳光是平稳输入的直流电,闪电就是直接往电路里灌高压浪涌。生物组织遇到这种瞬时高能放电只会发生碳化、蛋白质变性甚至瞬间气化,根本来不及启动任何生化反应。光合作用里的核心色素分子叶绿素,对光的波长有严格的筛选机制,只吸收蓝紫光和红橙光波段来激发电子跃迁。闪电光谱里充斥着紫外线和电离射线,不仅无法被捕获,反而会把叶片表面的保护蜡质层烤出焦痕。
自然界不存在让植物直接靠打雷完成能量转换的生理结构。树木在雷雨天的反应也不是充电,而是本能地收缩气孔、降低蒸腾速率来保护自己。狂风卷着雨点砸下来,树冠会顺势调整枝叶角度减少受力面积。这些应激反应和制造养分的光合作用毫无交集。
植物吃光的具体过程
了解清楚闪电为什么不行,就得看光合作用到底在细胞里干了什么。这个过程发生在叶绿体的类囊体膜上,像一条分工明确的装配线。阳光照射到色素复合体上时,光子能量被吸收并传递下去,驱动水分子裂解成氧气、氢离子和自由电子。这些高能电子沿着呼吸链一路奔跑,同时推动腺苷三磷酸的合成。等到光反应结束,植物会把二氧化碳固定进五碳糖里,通过卡尔文循环一步步拼出葡萄糖。
这套机制对光照的依赖性非常苛刻。它需要的是持续、温和且波长匹配的光子流。阴天时云层散射阳光,光子密度下降,电子传递链的速度就会跟着放慢。植物并不会因此停止运转,而是切换到低功率模式维持基本代谢。一旦云开日出,光合速率立刻回升。这种动态调节能力是数十亿年演化出来的生存策略。
雷雨天的光照条件其实并不利于光合作用进行。乌云密布时到达地面的可见光不足晴天的百分之十,叶片接收到的光子数量断崖式下跌。这时候植物会大量消耗白天储存的淀粉来维持生命活动,属于典型的人不敷出状态。等雨过天晴、云层散尽,光照强度恢复,植株才会重新进入高光效运转期。草木疯长的错觉往往出现在天气转好的第二天到第三天。
雷雨过后草木疯长的真相
既然闪电不供能,为什么一场雷雨后田野里的禾苗确实肉眼可见地窜高了一截?答案藏在空气里。地球大气中百分之七十八的成分是氮气,这种分子结构极其稳定,两个氮原子靠三键死死锁在一起,普通的生物化学手段根本打不开它。植物根系无法直接吸收气态氮,必须依赖固氮作用把它转化成氨或硝酸盐。
闪电的高温高压恰好提供了打破氮氧共价键的能量门槛。放电通道里瞬间产生的高温能让空气中的氮气与氧气发生化学反应,生成一氧化氮和二氧化氮等活性氮氧化物。这些气体随雨水溶解后形成硝酸和亚硝酸,随着降水渗入土壤表层,最终转化为植物可以吸收的硝态氮肥。
这种天然施肥的效果在阔叶林边缘和高海拔草甸表现得格外明显。雷雨频繁的季节里,地表枯枝落叶层下方的微生物活性同步被激活。氮素进入根系后首先参与氨基酸合成,接着是蛋白质组装,最终大量涌入叶绿体内部构建光合酶系统。叶片里的叶绿素含量上升,气孔开闭效率改善,光合作用速率自然水涨船高。
闪电对土壤的真实贡献
把大气固氮的账算清楚就能明白大自然的分配逻辑。全球每年通过雷电作用固定的活性氮总量大约在五到十亿吨之间。这个数字听起来庞大,但分摊到广袤的土地上其实相当有限。它主要填补了自然生态系统中无机氮肥的自然亏空。
雷雨带来的养分输送具有明显的随机性和区域性特征。放电落点决定了硝酸的初始沉降位置,降雨强度影响养分的淋溶深度。浅根系草本植物往往能更快截取表层营养,而深根木本树木则依赖土壤微生物网络的二次转化。这种分布不均恰恰维持了生态位的多样性。
现代农业大量使用合成氨化肥后,人为固氮量已经远远超过自然雷电的贡献。但在原始森林、湿地草原和未开垦的坡地上,闪电依然是不可替代的天然养分补给员。它不负责给植物供电,而是负责给土壤加餐。叶片吃饱了氮元素,光合作用的流水线才能满负荷运转。
打雷本身不是光合作用,却悄悄为这场生化反应铺好了路。下次听见天边滚过闷雷时,不必寻找电火花与叶脉的关联,留意雨后泥土散发的腥甜气息就好,那是氮素正在根系里悄然发酵的信号。
本文地址:https://zlaiw.com/8172.html





暂无评论内容