
林间垂直飞行的真实尺度
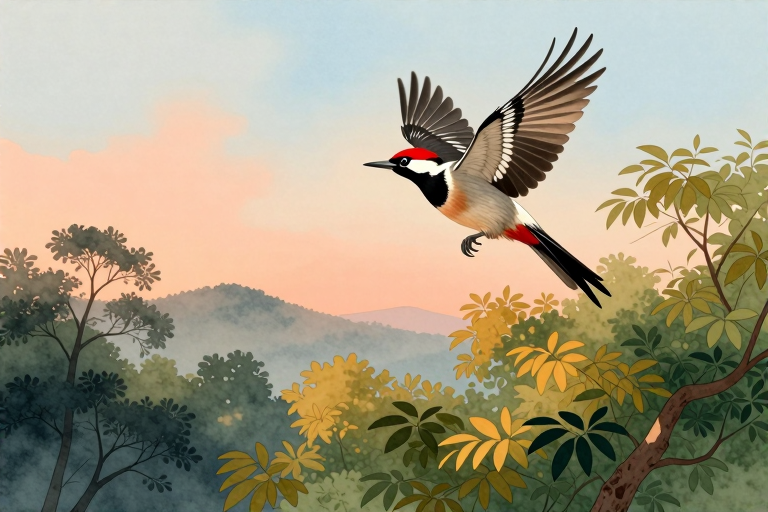
冬日的白桦林里,枯枝被冷风刮得吱呀作响。突然一阵密集的笃笃声从头顶传来,节奏快得像敲击铁皮桶。你下意识抬头寻找那个发出声响的身影,以为会看到它振翅冲向云霄的矫健身姿。然而镜头拉近,答案往往让人意外:啄木鸟并没有往高处钻。它在离地两三层树冠的位置横向跳跃,偶尔扑腾着短促的翅膀滑向另一棵树的树干。如果你真的追问啄木鸟飞多高,现实的答案比想象中朴素得多。绝大多数时候,它们的垂直飞行高度被牢牢限制在几十米到一两百米的范围内,基本贴着森林的树冠层打转,极少脱离林线去挑战开阔的天空。
森林里的空间利用有着严格的潜规则。啄木鸟的日常轨迹几乎都钉死在树干和粗枝构成的垂直坐标上。它们不是靠翅膀征服天空的猎手,而是用双脚丈量树皮的攀登者。当你看到它从一棵树的顶端飞向另一棵时,那其实是一次精心计算的滑翔跳跃。成年个体的翼展通常只有二十多厘米,配合着圆钝的后缘形状,这种机翼设计在空气动力学里专门负责低速高升力,适合在密林缝隙中灵活转向,而不是像雨燕或猛禽那样利用上升气流盘旋拉升。森林内部的气流是破碎的,乱流和湍涡无处不在。啄木鸟一旦试图拉高爬升,厚重的胸肌和密集的骨骼结构就会成为负担。
它们更习惯用尾羽撑住树皮作为第三支点,配合趾爪呈对生或异生的抓握力,一步步向上攀爬。这种移动方式消耗的能量只有连续扑翼的三分之一左右。在食物分布高度上,甲虫幼虫通常藏在树干中下段的韧皮部与木质层交界处。垂直飞得再高,也找不到更密集的猎物源。自然选择早就替它们做好了成本核算:往高处飞的收益远远覆盖不了燃料开支。
头重脚轻的升力物理限制
把一只啄木鸟放在天平上称,你会发现它的重心明显靠前。为了承受每天上千次敲击硬木产生的反作用力,它们的颅骨进化出了海绵状的松质骨层和致密的骨质缝合线,像戴了一顶内置减震器的安全帽。舌骨更是绕过头顶再折回鼻腔下方,形成一张弹性极强的缓冲网。这些精密的防护装备直接拉高了上半身的重量比例。
飞行不是静态悬挂,而是动态对抗重力。翅膀产生的升力必须刚好抵消整机的自重才能维持平飞或爬高。当身体前段过重时,机翼就需要更大的攻角和更快的频率来补偿重心偏移。对于啄木鸟有限的肌肉输出功率而言,这已经接近生理红线。更关键的是骨骼密度问题。
善于高空长途迁徙的鸟类,通常拥有中空的骨管和发达的气囊系统,以此减轻体重并提高氧气交换效率。啄木鸟反其道而行,它们的腕骨和掌骨异常粗壮致密,肋骨相互交织成网状支架。这种实心化改造是为了保证敲击瞬间躯干不发生形变或断裂。沉重的骨架换来的是钻木如泥的穿透力,同时也切断了它们向高空延伸的物理通道。空气不会为任何生物破例提供额外托举,体重分布一旦失衡,垂直高度自然被锁死在贴近树冠的安全区间内。
山地海拔与飞行高度的差异
很多人会把生活在高山上和飞得高混为一谈,这在地理学和生态学上完全是两回事。确实,从阿尔卑斯山麓到横断山脉的针叶林带,都能找到不同种类的啄木鸟活跃身影。某些山地亚种甚至可以分布在海拔两千五百米甚至三千米的冷杉林中。但这只是水平分布向垂直地形的妥协与拓展。
高海拔地区意味着更低的含氧量和更短的生长季,树木的年轮长得慢,树皮下的昆虫活动周期也随之拉长。啄木鸟选择这里,是因为竞争压力较小,枯立木和倒木提供了充足的育幼场地。它们在地面上的立足点确实变高了,但身体离开树干后的运动轨迹依然没有突破森林的垂直包络面。
一旦遭遇暴风雪或天敌逼近,它们的应急机动依然是短促的水平转移或是顺着陡坡滑降到低海拔沟谷。大气高度的概念属于候鸟和鹰隼,属于那些懂得利用热气流盘旋的长距离旅行者。啄木鸟的高海拔生存史是一部关于耐寒与耐饥的微缩进化档案,而不是飞行高度突破的记录本。它们把极限留在了地形的起伏里,而非空气的厚度中。
钻啄生活方式的空间契约
理解了这个高度边界,再回头听林子里传来的敲击声,感受会完全不同。那声音不再是单纯的噪音,而是某种精密工程的运转提示音。每一记重击都在消耗着它们有限的升力储备,每一次攀爬都在验证着头重脚轻的力学平衡。
啄木鸟用翅膀换来了凿子,用轻盈换取了坚固,这是一份写在基因里的空间契约。人类总习惯仰望天空寻找答案,却常常忽略了脚下这方寸之地的演化逻辑。它们不追求无边界的高度自由,而是把全部生理资源押注在垂直方向的深度开发上。
下次当你再次在公园里听到树上传来的规律叩击声时,不妨把视线放低一些。不需要去追索它们能触及的天际线,因为它们的王国从来就不在云端,而是牢牢锚定在那一圈圈年轮与粗糙树皮交织的垂直迷宫里。读懂了这种高度上的自我设限,也就看懂了一种为了生存极致专注的生命策略。
本文地址:https://zlaiw.com/6345.html






暂无评论内容