
水边的蓝影子与漫长的分类史
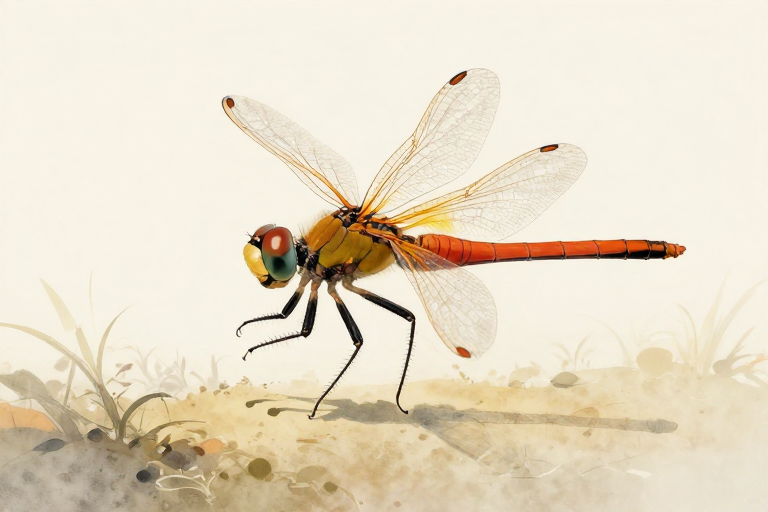
夏末的午后,池塘边缘的空气被水汽泡得发软。芦苇丛里忽然掠过一道钴蓝色的光,翅膀在斜阳下折射出细碎的虹彩,那是蜻蜓停歇的瞬间。你或许也曾驻足看过它收拢双翼的模样,修长、轻盈,像一架微缩的飞行器。可当你好奇地问起“到底有多少种”,答案却常常卡在喉咙里。
分类学家给它们排座次,从来不是按着名单念经。从林奈时代起,学者们就试图用拉丁文为这些飞行的精灵贴上标签。早期的目录厚得像砖头,页码不断向后推延。那时候的统计数字像潮水一样涨落不定,三万、四万,甚至更多。随着显微镜的光学镜片越来越精密,DNA测序仪开始吐出碱基对的序列,这个数字终于慢慢稳在了两万三千到两万五千之间。但这并不是终点。每年都有新的物种被从潮湿的落叶层里翻出来,也有旧的记录因为命名规则的改变而被合并或拆分。蜻蜓的世界没有一张盖棺定论的名册,它是一张正在不断重绘的地图。
翅膀上的脉络藏着多少秘密
看一只蜻蜓,第一眼总是盯着那对透明的膜质翅翼。停息时平铺如伞,飞行时却像两架独立操纵的螺旋桨。古人说“蜻蜓点水”,其实它们在水面产卵的动作精准得像在敲击琴键。翅翼上的网状脉络并非随意排列,每一条主脉的走向、每一个小室的形状,都记录着它们祖先飞行的轨迹。分类学上,这些微小的骨骼成了划分物种的铁律。
可越是细看,越会发现大自然的玩笑:同一种蜻蜓在不同季节会换装,同一块湿地里飞着的个体,体型却能差出将近两成。于是学者们把目光移向更隐秘的地方。雄虫腹末的交配器结构、雌虫产卵瓣的形状,这些肉眼几乎难以分辨的细节,成了区分近缘种的钥匙。到了分子生物学时代,传统的形态分类遇到了瓶颈。有些长得一模一样的“孪生种”,基因序列却隔着十万八千里;反之,外表差异巨大的种群,DNA比对下来却是同一个家族。
现在统计蜻蜓的种类,早已不是拿着镊子在标本堆里数翅膀了。研究者把触角伸向环境DNA测序、声谱分析和地理信息系统,试图在庞大的数据流里打捞真实的多样性轮廓。翅脉的微小变异往往藏在亚毫米级别的结构差异中,只有高倍显微镜下的三维重建才能捕捉到那些决定性的演化节点。
新种为何总爱躲在雨林深处
如果你翻开近十年的分类学论文目录,会发现一个有趣的现象:绝大多数新增的蜻蜓物种,都来自东南亚的热带山地、亚马逊盆地的支流,或是非洲中部的低地沼泽。这些地方湿度极高,植被层次复杂,水体交错如网,恰好是这类昆虫繁衍的天然温床。
热带雨林里的微气候瞬息万变,一座山脊这边湿润凉爽,翻过去就是干燥向阳的坡面,隔离的地形让种群各自演化,最终分化出截然不同的模样。采集队背着防潮箱深入丛林时,常常要面对蚊虫叮咬和泥泞湿滑的挑战。他们靠的是耐心与经验:在特定海拔寻找特定的附生植物,利用紫外灯引诱夜行性种类,甚至只是静静地等待黄昏时分成虫的交飞群出现。
每一次野外考察,都可能带来几十种新记录。但与此同时,湿地被填平、河道被截断、农药随雨水流入支流,许多尚未被科学界正式命名的物种,可能连名字都没来得及留下就消失了。统计数字的增长与生态系统的萎缩,正在同一片土地上上演着无声的拉锯。
数字之外,它们究竟是谁的邻居
两万多个名字背后,是庞大的演化支系。蜻蜓目并不只有我们常说的“大蜻蜓”,还包括体型更小、停栖时翅膀并拢于背上的豆娘类。整个目的物种加起来接近六千种,而狭义上的蜻蜓约一万八千到两万余种。
分类学家在调整界限时,偶尔会把一些原本归入其他类的昆虫重新划回蜻蛉总科,也会因为分子证据的更新而推翻过去的形态学结论。命名法规的每一次修订,都会让总数发生微妙的偏移。数字本身并不冰冷,它只是生态系统的晴雨表。
蜻蜓幼虫生活在水中,用直肠鳃呼吸,靠下唇突然弹出捕食水中的孑孓或小型甲壳类;成虫在空中巡游,是典型的广谱性掠食者。它们在食物链中扮演着承上启下的角色,既是蚊蝇的控制者,也是鸟类、蜘蛛和大型水生昆虫的猎物。
湿地里的蜻蜓种类越丰富,通常意味着水体溶氧充足、底栖生物群落完整。当某片水域突然只剩下两三种耐污能力极强的广布种时,生态学家就会警觉:水质的底线可能已经悄悄后退了。它们对溶解氧量极度敏感,幼虫的存活直接取决于水下微环境的稳定程度。
所以,“有多少种”从来不是一个静态的填空题。它是分类学者在显微镜前反复校准刻度尺的过程,是野外考察队员在雨林里记录海拔与经纬度的笔迹,也是环境DNA测序仪吐出的碱基对序列交织成的网络。每次数字的跳动,都对应着某片栖息地的变迁、某种演化路径的发现,或是一次命名法规的修订。
下一次你在池塘边再看到那道掠过水面的光影时,不妨多停一秒钟。那不仅仅是一个物种的名字,而是地球漫长呼吸中,一滴正在努力保持清澈的水珠。
本文地址:https://zlaiw.com/6164.html






暂无评论内容